


두 가지 방법이 있습니다가바식물에서의 합성 및 변형: 하나는 글루타메이트 탈탄산효소(GAD)가 션트(shunt)라고 하는 글루타메이트의 탈탄산 반응을 촉매한다는 것입니다. 다른 하나는 폴리아민 분해 산물이 그것을 형성하기 위한 변형이며, 이를 폴리아민 분해 경로라고 합니다.
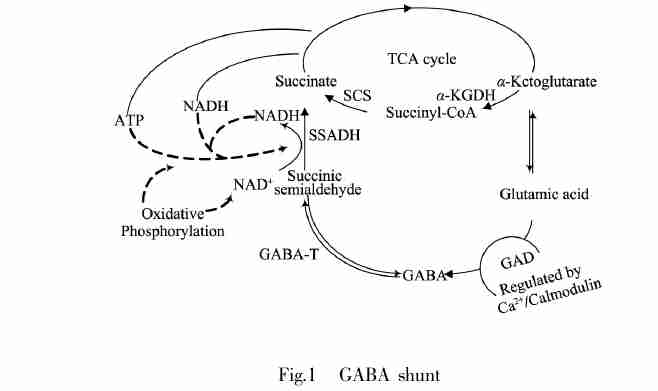
고등 식물에서 신진 대사는 주로 세 가지 효소에 의해 완료됩니다. 첫째, GAD의 작용하에, L-글루타민산(Glu) in - 그것을 생성하는 위치에서 비가역적 탈탄산 반응이 일어나고, 그 다음 트랜스아미나제의 촉매 작용하에 피루브산 및 피루브산과 반응합니다. - 케토글루타레이트는 반응하여 숙신산을 생성합니다. 세미알데하이드. 마지막으로, 숙신산 세미알데하이드 탈수소효소(SSADH)는 숙신산 세미알데하이드의 산화적 탈수소화를 촉매하여 숙신산을 형성하고 마침내 Krebs 회로에 들어갑니다. 이 대사 경로는 분기라고 하는 TCA 회로의 분기를 구성합니다.
식물에서 세포질의 GAD와 미토콘드리아의 SSADH는 경로 대사를 공동으로 조절하며, 여기서 GAD는 합성을 위한 속도 제한 효소입니다. 식물 GAD는 칼모듈린(CAM) 결합 영역을 포함합니다. GAD 활성은 Ca2+와 H+의 농도에 의해 조절될 뿐만 아니라 GAD 조효소 PLP(pyridoxal phosphate)와 기질 글루타메이트의 농도에 의해서도 영향을 받습니다. 이 이중 조절 메커니즘은 세포 축적을 환경 스트레스의 성격 및 심각성과 연결합니다. 한랭 쇼크, 열 쇼크, 삼투압 및 기계적 손상은 세포액에서 Ca2+의 농도를 증가시킬 수 있습니다. Ca2 plus는 cam과 결합하여 Ca2 plus / CAM 복합체를 형성하여 정상적인 생리적 pH 조건에서 GAD 유전자 발현을 자극하고 GAD 활성을 향상시킬 수 있습니다. 산성 pH에 의해 생성되는 외관은 pH 세포의 pH를 스트레스 감소시키고 산성에 의한 세포 손상을 늦추기 때문입니다. 식물의 가지가 합성의 주요 경로로 간주됩니다. 대부분의 연구는 GAD 활동을 개선하고 이를 강화하는 데 중점을 둡니다.
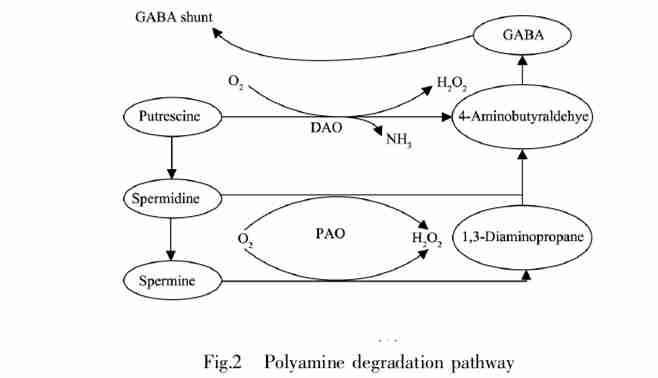
폴리아민(polyamine), 퓨트레신(polyamine) 및 퓨트레신(polyamine)을 포함하는 퓨트레신(polyamine) 및 퓨트레신(polyamine). 폴리아민 분해 경로는 디아민 또는 폴리아민(PAS)이 디아민 산화효소(DAO) 및 폴리아민 산화효소(PAO)에 의해 촉매화되어 4-아미노부티르산을 생성한 다음 4-아미노부티르산 탈수소효소( 제작) 제작합니다. 폴리아민 분해 경로는 최종적으로 가지와 교차하여 TCA 회로 대사에 참여합니다. 디아민 산화효소와 폴리아민 산화효소는 각각 유기체에서 put, SPD 및 SPM의 분해를 촉매하는 핵심 효소입니다. Vicia faba의 발아 동안 혐기성 스트레스는 폴리아민 합성의 중요한 효소 활성의 증가를 유도하고 폴리아민의 축적을 촉진할 수 있습니다. 동시에 폴리아민 산화효소의 움직임도 증가합니다. 폴리아민 분해 경로는 합성 및 조립을 촉진하고 Vicia faba의 스트레스 저항성을 향상시킵니다. 그 결과 소금 스트레스 하에서 대두 뿌리의 유리 폴리아민 함량이 증가하고 Dao의 활성이 증가하며 농축이 11~17배 증가하는 것으로 나타났습니다. 폴리아민 분해 경로는 합성의 또 다른 중요한 경로로 간주되지만 단자엽 식물에서 합성하는 능력은 가지보다 훨씬 낮습니다.
밀 개화 중 스프레이(200mg/L)는 막 안정성을 조정하고 항산화 능력을 증가시키며 고온에서 밀 손실을 줄일 수 있습니다. 외인성의 적용은 또한 오이 묘목의 성장에 눈에 띄는 영향을 미쳤습니다. 온열 요법은 중추 뉴런의 활동을 억제하고 콜린성 신경계를 활성화하며 체온을 높일 수 있습니다. 고온에서 오랜 시간 동안 환경에 적응하고 체온을 조절하기 위해 시상하부의 뉴런의 움직임이 증가합니다. 그것은 혈장을 증가시키고 식도 온도를 낮추기 위해 저온에 민감한 핵 혈장의 카테콜라민 농도를 억제합니다.
저온은 식물의 생합성 능력을 감소시키고 필수 기능을 방해하며 영구적인 손상을 일으킵니다. 동물은 또한 저온에서 부상을 입거나 더 심각한 피해를 입힐 수 있습니다. 저온 내성과 관련하여 저온에서 상향 조절되는 생물학적 발현. 저온에서는 아미노산, 당, 아스코르브산염, 푸트레신 및 일부 트리카르복실산 순환 중간체를 포함한 대사 산물의 75%가 증가합니다. 에너지 대사에 관여하는 아미노산 대사와 효소의 전사 풍부도가 증가합니다. 션트 경로를 강화하여 ATP를 생성하고 GHB를 축적할 수 있습니다. 또한 저온에서 멜라토닌을 사용하면 스페르민, 스페르미딘, 프롤린이 축적되어 디아민 산화효소의 발현을 촉진할 수 있습니다. 그것은 퓨트레신 경로를 통해 합성되어 H2O2 축적과 페닐프로판 경로 플럭스를 감소시켜 부식 방지 및 내한성을 달성합니다.
그것은 오랫동안 식물의 다양한 스트레스 및 방어 시스템과 관련되어 있습니다. 식물의 자극에 따라 증가합니다. pH, 온도 및 외부 천적 자극과 같은 외부 변화, 내부 자극 및 이온 환경에 반응하는 식물의 효과적인 메커니즘으로 간주됩니다. 그것은 또한 항산화, 숙성 및 식물을 신선하게 유지하는 것과 같은 식물의 내부 환경을 조절할 수 있습니다. 그것은 또한 최근 몇 년 동안 확장된 정보를 전달하는 신호 분자로 식물에서 발견되었습니다. 대두, 애기장대, 재스민, 딸기 및 기타 식물에서 발견되었습니다. 그것의 낮은 농도는
또한 외부 산성화에 반응합니다. 낮은 pH에서 세포에서 빠르게 증가하며 이러한 축적은 미생물 및 동물에서도 존재합니다. 산성 pH에서 세포 내 H 플러스가 성장하고 세포 내 함량이 증가했습니다. 합성은 세포내 산성화를 완화하는 H 플러스를 소모합니다. 이 빠른 반응 메커니즘은 미생물에도 존재합니다. 그것을 생산하는 동안 양성자 호흡 사슬 복합체의 발현을 증가시키고 ATP 합성을 촉진합니다. 또한 F1F{1}}ATP 가수분해효소의 활성을 상향 조절하고 산성 조건에서 ATP 의존성 H 플러스 배설 과정을 촉진합니다. 동물에서 세포는 또한 세포외 환경의 pH를 변경하기 위해 글루타메이트를 분비합니다. 더 중요한 것은 생리학적 환경에서 zwitterionic이며 산-염기 조절에서 특정한 역할을 합니다.가바식물의 성장과 발달에 도움이 되며 고농도에서는 반대 역할을 합니다.